




 1

Introducción
Los microminerales son elementos esenciales que forman parte de la estructura de numerosas moléculas y participan en multitud de procesos biológicos. Por ello, la suplementación de microminerales en las dietas para porcino, es fundamental para su crecimiento, reproducción y el adecuado desarrollo del sistema inmunitario. Hasta hace unos años, los microminerales se añadían a las dietas para controlar deficiencias nutricionales como la anemia (hierro), la paraqueratosis (zinc) y el bocio (yodo). Sin embargo, las necesidades de los microminerales varían dependiendo del estado fisiológico del animal y de los desafíos a los que está sometido el organismo y son difíciles de estimar. La funcionalidad de ciertos microminerales en porcino está relacionado con diversos beneficios como por ejemplo:
- el zinc y del selenio están asociados a la mejora del estado inmunitario y la resistencia a enfermedades.
- el manganeso puede mejorar eficiencia y calidad de la canal.
- el cobre y el zinc presentan funcionalidad derivada del control de patologías digestivas.
Sin embargo, desde hace ya más de una década la EFSA ha establecido normativas regulatorias de obligado cumplimiento a nivel europeo para limitar la utilización de microminerales (básicamente Cu, Reglamento (UE) 2018/1039; y Zn, Reglamento (UE) 2016/1095 con la revisión y prohibición del uso terapéutico en 2022) y reducir la contaminación ambiental.
La adición conjunta de vitaminas y microminerales representan alrededor del 1-2% del coste de formula en un pienso para porcino.
Debido a su pequeño coste económico, en Europa la mayoría de piensos se formulan para cumplir con la normativa europea sin contemplar requerimientos específicos en función de sistema productivo, estatus sanitario, estrés, o presión fisiológica del animal.
Los microminerales se incorporan a las dietas de porcino a través del corrector vitamínico-mineral, ya que los ingredientes comúnmente utilizados en la formulación de piensos suelen ser deficitarios, poco disponibles, muy variables y pueden generar interacciones con otros micronutrientes, estructuras proteicas o compuestos con elevada capacidad de intercambio catiónico.
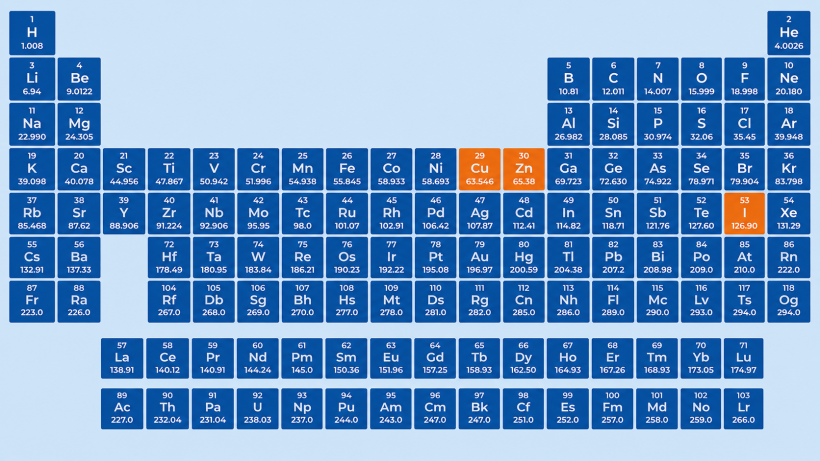
Los principales microminerales incluidos en los correctores vitamínico-minerales para alimentación porcina son:
- cobre (Cu)
- zinc (Zn)
- hierro (Fe)
- manganeso (Mn)
- yodo (I)
- selenio (Se)
¿Orgánico o inorgánico?
Antes de abordar en detalle cada uno de los microminerales, conviene señalar que estos pueden suministrarse en forma de fuentes inorgánicas u orgánicas. Las fuentes inorgánicas incluyen principalmente sales minerales, como sulfatos, óxidos, cloruros, carbonatos y fosfatos, y se caracterizan por su amplia disponibilidad comercial y su menor coste. Mientras que las fuentes orgánicas corresponden a microminerales asociados a moléculas orgánicas, como aminoácidos, péptidos, proteínas, polisacáridos, ácidos orgánicos o análogos de la hidroximetionina (HMTBa), e incluyen formas como quelatos, complejos minerales, proteinatos y otros complejos con ligandos orgánicos. La principal diferencia entre ambas radica en la naturaleza del enlace químico del mineral, lo que influye en su estabilidad durante la digestión, su absorción intestinal y su aprovechamiento metabólico por el animal. En general las fuentes orgánicas presentan un mayor potencial de biodisponibilidad (aunque existen diferencias de biodisponibilidad entre los diferentes tipos de microminerales orgánicos en función de su índice de quelación y la constante de estabilidad entre el mineral y el ligante) mientras que las inorgánicas continúan siendo ampliamente utilizadas en nutrición porcina debido a su eficacia demostrada, elevada solubilidad en determinadas formas químicas y menor coste de suplementación, pero con mayor incertidumbre acerca de las posibles interacciones.
Zinc (Zn)
Funciones fisiológicas, absorción y metabolismo:
El zinc (Zn) es un micromineral esencial implicado en múltiples funciones biológicas, que pueden agruparse en cuatro grandes áreas:
- Función enzimática y antioxidante: Actúa como cofactor de aproximadamente 300 enzimas, incluidas aquellas implicadas en la síntesis de proteínas, la replicación del ADN, la división celular y el desarrollo muscular.
- Respuesta inmunitaria: Es un mineral clave para el correcto funcionamiento del sistema inmunitario. Participa en la maduración y activación de los linfocitos T y B, la producción de anticuerpos, el mantenimiento de la integridad de la barrera intestinal y la regulación de la respuesta inflamatoria.
- Procesos de crecimiento: Desempeña un papel relevante en la salud ósea y la reparación tisular. Interviene en la mineralización ósea, la activación de los osteoblastos y la síntesis de colágeno, procesos esenciales para la formación y mantenimiento de huesos, piel y tejidos conectivos, así como para la queratinización y la cicatrización de heridas.
- Reproducción: En los machos es esencial para la espermatogénesis y contribuye a la estabilidad y viabilidad de los espermatozoides. En las hembras interviene en la maduración folicular y en el desarrollo embrionario durante las primeras etapas de la gestación.
Recomendaciones nutricionales:
Tabla 1. Recomendaciones prácticas de Zn según la fase de producción publicadas en diferentes tablas de nutrición: FEDNA (Española), CVB (Holandesas), INRA (Francesa), NRC (EEUU) y ROSTAGNO (Brasil).
| Fase de producción | FEDNA 2013 mg/kg de pienso |
CVB 2020 mg/kg |
INRA mg/kg |
NRC mg/kg de pienso |
Rostagno, 2024 mg/kg PV de ganancia |
| Lechones | 100-130 (óptimo: 120) |
- | 15 kg PV:80 (Revy et al.,2003) |
5-11 kg PV: 100 11-25 kg PV: 80 |
Inorgánico: 208 Orgánico: 93,6 |
| Cerdos de crecimiento | 110-120 (óptimo: 110) |
- | 25 kg PV:65 (Revy et al.,2003) |
25-50 kg PV: 60 | Inorgánico: 208 Orgánico: 93,6 |
| Cerdos de engorde | 90-110 (óptimo: 80) |
- | 50-100 kg PV:50 (Revy et al.,2003) |
50-135 kg PV: 50 | |
| Cerdas reproductoras | 95-120 (óptimo: 100) |
- | Cerda gestante y lactante: 100 | - | Inorgánico: 137,4 Orgánico: 61,8 |
CVB (2020) no presenta requerimientos de Zn para cerdos de ninguna fase productiva ya que su inclusión máxima está regulada por las directrices europeas.
- La deficiencia de Zn tiene un impacto especialmente marcado sobre el crecimiento y el desarrollo de los animales, manifestándose en una menor tasa de crecimiento, un empeoramiento de la conversión alimentaria y una reducción del desarrollo muscular y de la mineralización ósea. Además, compromete la función inmunitaria al disminuir la actividad de los linfocitos T y la producción de anticuerpos, lo que incrementa la susceptibilidad a infecciones. Asimismo, la deficiencia de Zn puede alterar la integridad de la barrera intestinal, aumentando su permeabilidad y favoreciendo la translocación bacteriana, con las consiguientes repercusiones sobre la salud y el rendimiento productivo (Pajarillo et al., 2021; Shurson et al., 2022).
- Toxicidad: Por otro lado, aunque menos frecuentemente descrito, un exceso de Zn también puede tener efectos adversos. Entre ellos destacan la interferencia con la absorción de otros minerales, especialmente el cobre, pudiendo inducir deficiencias secundarias; las alteraciones de la microbiota intestinal, asociadas a un mayor riesgo de inflamación; y la acumulación hepática del mineral. En casos graves de intoxicación, esta acumulación puede provocar daño hepatocelular, necrosis hepática e ictericia (Cai et al., 2025).
Fuentes de Zn y normativa europea:
La normativa europea permite incorporar Zn en piensos con un 12% de humedad para:
- Lechones y cerdas: hasta 150 ppm
- Cerdos de engorde: hasta 120 ppm
En Europa se pueden utilizar fuentes inorgánicas de Zn como:
- sulfato de zinc heptahidratado (3b604, una de las fuentes de Zn más utilizadas a nivel de nutrición porcina)
- acetato de zinc dihidrato (3b601)
- cloruro de zinc anhidro (3b602)
- óxido de zinc (3b603)
- sulfato de zinc monohidratado (3b605)
y fuentes orgánicas de Zn en forma de:
- 1-selenometionina de zinc (3b818i)
- quelato de zinc de aminoácidos hidratado (3b606)
- quelato de zinc de hidrolizados de proteínas (3b612)
- quelato de zinc de glicina hidratado (sólido, 3b607) o líquido (3b608)
Cobre (Cu)
Funciones fisiológicas, absorción y metabolismo:
El Cobre (Cu) es un micromineral involucrado en la respiración celular, la pigmentación de los tejidos, la formación de la hemoglobina y el desarrollo del tejido conectivo.
Principalmente, el Cu es absorbido en el tracto gastrointestinal superior, especialmente en el duodeno, aunque parte del Cu también es absorbido en el estómago. Además, se ha demostrado que el Cu ejerce actividad antimicrobiana cuando se administra en concentraciones de entre 100 y 250 ppm (Shannon, 2019). Asimismo, la suplementación con 150 ppm de Cu, tanto en forma de sulfato de cobre (CuSO4) como de óxido cuproso (Cu2O), ha mostrado efectos positivos sobre la modulación de la microbiota intestinal, aunque con perfiles de respuesta diferenciados según la fuente utilizada (Blavi et al., 2021). En comparación con los animales suplementados con CuSO4, los cerdos alimentados con Cu2O presentaron una mayor diversidad microbiana y una menor abundancia de Enterobacteriaceae y Clostridium en la porción proximal del intestino, cambios que podrían explicar, al menos en parte, la mejora en el peso corporal observada con esta fuente de Cu. Aunque cuidado que, en Europa, existen límites de inclusión de Cu en las dietas en función de la edad de los cerdos que se explica más adelante.
El Cu también es un micromineral esencial para la actividad de varias metaloenzimas como el citocromo C oxidasa, lisil oxidasa, citosólico Cu-Zn superóxido dismutasa (SOD1), SOD 3 extracelular, monoamina oxidasa y tirosinasa (Manto, 2014).
Además, el Cu impacta positivamente sobre el crecimiento y la productividad de los cerdos gracias a las siguientes acciones:
- Agente antimicrobiano
- Mejora de la digestibilidad de ciertos nutrientes
- Mejora la respuesta inmune
- Protección de las células contra la oxidación y los daños producidos por los radicales libres.
Recomendaciones nutricionales:
Las necesidades nutricionales de Cu en porcino varían según la edad, el estado fisiológico y la composición de la dieta.
Tabla 2. Recomendaciones prácticas de Cu según la fase de producción publicadas en diferentes tablas de nutrición: FEDNA (Española), CVB (Holandesas), INRA (Francesa), NRC (EEUU) y ROSTAGNO (Brasil).
| Fase de producción | FEDNA 2013 mg/kg de pienso |
CVB 2020 mg/kg |
INRA mg/kg |
NRC mg/kg de pienso |
Rostagno, 2024 mg/kg PV de ganancia |
| Lechones | 8-15 | - | - | 5-11 kg PV: 6,0 11-25 kg PV: 5,0 |
Inorgánico: 23,0 Orgánico: 10,3 |
| Cerdos de crecimiento | 9-13 | - | - | 25-50 kg PV: 4,0 | Inorgánico: 23,0 Orgánico: 10,3 |
| Cerdos de engorde | 8-10 | - | - | 50-135 kg PV: 3-3,5 | |
| Cerdas reproductoras | 10-15 | - | - | Cerda gestante:10 Cerda lactante: 20 |
Inorgánico: 15,2 Orgánico: 6,84 |
CVB (2020) no presenta requerimientos de Cu para cerdos de ninguna fase productiva ya que su inclusión máxima está regulada por las directrices europeas.
Se han observado efectos positivos con inclusiones mayores, aunque fuera del rango de inclusión de Cu permitido en piensos en la Unión Europea. Por ejemplo, en reproductoras la inclusión de 60 ppm de Cu parece mejorar los índices reproductivos comparado con cerdas alimentadas con una dieta con 6 ppm de Cu (NRC, 2012). Mientras que otro estudio observó que cerdas alimentadas con dietas que contenían 250 ppm de Cu en forma de CuSO4 presentaron una menor tasa de eliminación, camadas más numerosas y lechones de mayor peso al nacimiento y al destete, en comparación con las cerdas alimentadas con dietas sin suplementación de Cu (Cromwell et al, 1993).
Hay que tener en cuenta que la absorción de Cu puede verse reducida por interacciones con zinc, hierro, azufre, molibdeno y fitatos, lo que condiciona las necesidades reales del animal.
Por ejemplo, elevadas concentraciones de Zn en la dieta aumentan los requerimientos de Cu al inducir una mayor síntesis de metalotioneína intestinal, proteína que se une al Cu y reduce su absorción (Underwood, 1977; Cousins, 1985) o la presencia de fitatos en la dieta puede reducir la absorción de Cu, debido a que el ácido fítico forma complejos con cationes minerales, entre ellos el Cu, disminuyendo su disponibilidad para la digestión y la absorción (Martin and Evans, 1986). Así, la suplementación con fitasas incrementa la absorción de Cu gracias a la liberación del Cu del ácido fítico (Adeola, 1995).
- La deficiencia de Cu en cerdos provoca anemia debido al rol del Cu en el metabolismo del Fe especialmente en la formación y desarrollo de la hemoglobina, alteraciones óseas, despigmentación, trastornos cardiovasculares, inmunodepresión, problemas neurológicos como ataxia y reducción del crecimiento, todo ello debido a la reducción de la actividad de enzimas vitales para tales funciones que son dependientes de Cu. Además, altera el metabolismo lipídico, favoreciendo hipercolesterolemia e hipertrigliceridemia.
- Toxicidad: Mientras que, se ha observado que la suplementación de dietas con Cu provoca cambios en el perfil de ácidos grasos de la canal y un exceso prolongado de Cu puede causar daño hepático debido a su acumulación hepática con elevada acción oxidante, también se ha observado hemólisis en cerdos alimentados con más de 250 ppm de Cu por un largo periodo y la inclusión de 750 ppm de Cu en cerdos de engorde ha provocado estrés oxidativo, aunque los cerdos toleran concentraciones más elevadas que los rumiantes gracias a su mayor capacidad de Cu por excreción biliar. Dosis elevadas de CuSO4 (250–500 ppm) incrementan la acumulación de Cu en el hígado de los cerdos. Aunque esta acumulación varía en función de la fuente de Cu utilizada. Otras fuentes, como el óxido cuproso (Cu2O), generan una menor acumulación hepática de Cu en los cerdos durante la fase de transición en comparación con el CuSO4, posiblemente debido a su menor solubilidad (Bikker et al., 2018; Hamdi et al., 2018).
Fuentes de Cu y normativa europea:
En nutrición porcina, el contenido de Cu es aportado minoritariamente a partir de alimentos animales y vegetales y mayoritariamente mediante el corrector vitamínico-mineral. Esto es así porque el contenido de Cu de las fuentes vegetales es bajo (maíz contiene 4 mg de Cu/kg, la cebada 6 mg/kg y el trigo 7 mg/kg, FEDNA) y muy variable en función del tipo de suelo de cultivo, del estado de madurez del cereal, y de las condiciones climatológicas durante su crecimiento (Underwood, 1999). Por ello, en nutrición porcina, la mayor parte del Cu es aportado mediante el corrector vitamínico mineral a partir de fuentes orgánicas o inorgánicas de Cu.
La mayoría de las fuentes de Cu utilizadas en porcino son orgánicas, mayoritariamente sulfatos pero también podemos encontrar quelatos de aminoácidos, glicinatos, etc. El sulfato de cobre pentahidratado (3b405) es la sal de referencia y se le asigna una biodisponibilidad del 100%.
Las fuentes de Cu inorgánicas, como el óxido de cobre (3b404), presentan una menor biodisponibilidad, pero con efectos positivos sobre la microbiota y resultados productivos, descritos en la bibliografía (Hamdi et al., 2018, Blavi et al., 2021).
Según la normativa europea vigente, el Cu puede administrarse a:
- Lechones lactantes y destetados hasta las 4 semanas postdestete, con un contenido máximo de 150 ppm de pienso, considerando un pienso con un 12 % de humedad.
- Cerdos entre las 5 y 8 semanas postdestete, el límite máximo se reduce a 100 ppm de pienso.
- Cerdos desde las 9 semanas postdestete hasta el sacrificio el contenido máximo permitido es de 25 ppm de pienso.
Estos máximos permitidos se deben principalmente por motivos medioambientales ya que, el Cu excretado en heces puede acumularse en el suelo agrícola, afectando la microbiota del suelo y los ecosistemas acuáticos.
Yodo (I)
Funciones fisiológicas, absorción y metabolismo:
El yodo (I) es un micromineral esencial que se absorbe principalmente en el duodeno y el yeyuno, aunque una parte también puede absorberse en el estómago. Su disponibilidad puede verse reducida cuando hay altos niveles de calcio o hierro en la dieta, ya que interfieren en su utilización.
Fisiológicamente, el I es indispensable para la síntesis de hormonas tiroideas (T3 y T4). Estas hormonas regulan el metabolismo basal, el crecimiento, el desarrollo del sistema nervioso y el metabolismo energético general, por lo que una adecuada provisión de yodo es fundamental para el correcto funcionamiento del organismo (Li et al., 2012).
Recomendaciones nutricionales:
Tabla 3. Recomendaciones prácticas de I según la fase de producción publicadas en diferentes tablas de nutrición: FEDNA (Española), CVB (Holandesas), INRA (Francesa), NRC (EEUU) y ROSTAGNO (Brasil).
| Fase de producción | FEDNA 2013 mg/kg de pienso |
CVB 2020 mg/kg |
INRA mg/kg |
NRC mg/kg de pienso |
Rostagno, 2024 mg/kg PV de ganancia |
| Lechones | 0,6-1 | 5-25 kg PV: 0,15 | - | 5-25 kg PV: 0,14 | Inorgánico: 1,73 |
| Cerdos de crecimiento | 0,4-0,7 | 25-135 kg PV: 0,15 | - | 25-135 kg PV: 0,14 | Inorgánico: 1,73 |
| Cerdos de engorde | 0,3-0,5 | - | |||
| Cerdas reproductoras | 0,6-1,3 | Cerda gestante: 0,58 Cerda lactante: 1,50 |
- | Cerda gestante y lactante: 0,14 | Inorgánico: 1,142 |
Las necesidades de I en lechones y cerdos de crecimiento son muy bajos. Estos valores se mantienen prácticamente estables entre fases, ya que la demanda fisiológica de I no varía de manera marcada a lo largo del ciclo productivo. La única excepción relevante es la cerda lactante, fase en la que CVB recomienda 1,5 mg/kg de I en cerdas lactantes, mientras que en la cerda gestante recomienda 0,58 mg/kg de I. Esto se debe a la elevada demanda metabólica durante la lactación y a la transferencia de hormonas tiroideas a la leche, fundamentales para el crecimiento y la termorregulación de los lechones.
- Las consecuencias de una deficiencia de I derivan principalmente de la disminución en la síntesis de hormonas tiroideas, lo que afecta múltiples funciones fisiológicas. La falta de T3 y T4 provoca un menor metabolismo basal y una reducción de la síntesis proteica, lo que se traduce en una capacidad de crecimiento disminuida. Durante la gestación, esta deficiencia puede causar alteraciones neurológicas en el desarrollo fetal, ya que las hormonas tiroideas son esenciales para la maduración del sistema nervioso. Un signo característico es el bocio, resultado de la estimulación excesiva de la glándula tiroides, que aumenta de tamaño intentando compensar la falta de I. También se observa una disminución en la producción de calor corporal, debido al metabolismo enlentecido. En cerdas reproductoras, la deficiencia puede provocar ciclos irregulares, reducción de la fertilidad, aumento de abortos tempranos y un mayor número de lechones nacidos muertos o débiles, consecuencia directa del hipotiroidismo materno y fetal (Cromwell et al., 1975). En cerdas lactantes, la menor actividad metabólica se traduce en una baja producción de leche, lo que afecta negativamente el crecimiento y la supervivencia de los lechones.
- Toxicidad: Un exceso de I también puede inhibir la síntesis de hormonas tiroideas, produciendo un estado de hipotiroidismo inducido por exceso de I. Cuando esto ocurre, los cerdos desarrollan prácticamente las mismas consecuencias que en una deficiencia, ya que la falta funcional de T3 y T4 provoca metabolismo reducido, menor crecimiento, bocio, alteraciones neurológicas y problemas reproductivos (Pecoraro et al., 2022).
Fuentes de I y normativa europea:
A nivel europeo, la normativa limita la inclusión máxima de I en los piensos de porcino es de 10 ppm en piensos con un 12% de humedad.
A diferencia del Zn y del Cu, no existen actualmente fuentes orgánicas de I como aditivo nutricional de uso general en la alimentación animal. En la práctica, la fuente mayormente utilizada es el yodato cálcico anhidro (3b202) debido a su mayor estabilidad durante el almacenamiento y procesado del pienso, aunque el yodato cálcico anhidro granulado y recubierto (3b203) y el yoduro potásico (3b201) también se utilizan con menor frecuencia.
