


 Empresa
Topigs Norsvin Colombia
Colombia
4
Productos
9
Publicaciones
98
Seguidores
¿Qué le pasa a la cerda desde el destete hasta 40 días después?


Hernando Blandón Montes
Director de Topigs Norsvin en Colombia
Continuando con la esencia del 4 4 4 4 queremos en el presente artículo llamar la atención sobre lo importante, por no decir indispensable, y entender por qué las hembras paridas deben tener la capacidad natural (¿genética?) de consumir el alimento suficiente y necesario para cubrir su producción de abundante leche (para camadas numerosas) sin perder más del 10% de su condición corporal y además seguir creciendo, inclusive en granjas ubicadas en climas cálidos (o tropicales que llaman), con temperaturas superiores a 24 grados C. y no climatizadas, como la gran mayoría de las granjas de nuestro país (Colombia).
Lo esencial, en CUATRO líneas
- Hiperproductiva no es lo mismo que hiperprolífica. La hiperprolífica ovula y pare mucho; la hiperproductiva, además, repite ese desempeño parto tras parto durante una vida larga. Esa diferencia se juega, en buena medida, en los 40 días que van del destete a la placentación.
- El destete no es un comienzo: es un corte de cuentas. La cerda entra a esta ventana con el capital corporal que le quedó después de la lactancia, y con ese capital arma los óvulos, el cuerpo lúteo y la placenta de la camada siguiente.
- La camada que nacerá en 115 días se define en estos 40. Dos de cada tres embriones que se pierden, se pierden entre los días 12 y 21 posinseminación, durante la implantación (Langendijk, 2021).
- Las hembras de parto 1 y 2 todavía están creciendo. Deben repartir nutrientes entre su propio crecimiento, la leche y la gestación siguiente (Corrales-Hernández et al., 2025); si el reparto se hace a costa de su cuerpo, el costo se cobra en el parto 2 y en la longevidad.

1. Los 40 días que valen el año
La cerda moderna vuelve a mostrar celo, en promedio, unos 4,8 días después del destete, y entre el 90 % y el 95 % de las multíparas lo hacen dentro de la primera semana (Bortolozzo et al., 2023). Ese dato, que suele leerse como un simple indicador de sala de servicio, en realidad es la punta visible de una cadena de eventos que empezó mucho antes —en la lactancia— y que no termina en la inseminación, sino unas cinco semanas después, cuando la placenta ya está formada y el número de fetos viables queda prácticamente fijo.
Para efectos de manejo conviene ver esta ventana como cuatro etapas encadenadas:
- El apagón hormonal de la lactancia (días 0-2).
- La preparación ovárica (días 2-5).
- El evento reproductivo propiamente dicho —celo, ovulación y fecundación (días 4-7).
- La construcción de la gestación: relevo hormonal, elongación embrionaria, implantación y placentación (días 7-40).
Cada etapa depende del estado en que la anterior la entregó. Ninguna se puede corregir hacia atrás.
2. Día 0: la cerda llega con lo que le sobró de la lactancia
El día del destete la cerda no se "reinicia". Llega con un balance nutricional que es consecuencia directa de cuánto comió y cuánto produjo durante la lactancia.
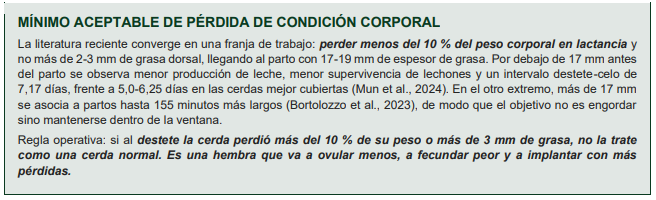
En cerdas de primer parto que no fueron capaces de consumir al menos 6,5 kg promedio día durante la lactancia, la pérdida de peso corporal fue del 19,6 % frente al 11,5 % de las que fueron capaces de alimentarse de acuerdo a sus necesidades. A las 48 horas del destete, esas hembras "restringidas" presentaban folículos 26 % más pequeños, un 89 % más de poliespermia y un 56 % menos de IGF-1 en el líquido folicular (Costermans et al., 2020). Dicho en lenguaje de granja: la hembra catabólica no solo se demora en salir en celo; sale en celo con óvulos de peor calidad, y los fecunda mal.
Los datos de campo confirman la misma línea. Las cerdas que en la lactancia tuvieron mayor consumo tardaron menos en salir en celo y tuvieron mejor tasa de servicio dentro de los siete días posdestete. Las que promediaron con 6,5 kg o más redujeron el intervalo destete-celo a 5,79 días contra 6,64 días. Y el hallazgo más rentable de todos: las cerdas que no perdieron condición corporal durante la lactancia produjeron cerca de dos lechones más en la camada siguiente que las que perdieron condición (Kirwa et al., 2026).
El consumo promedio en lactancia también revela dónde está el cuello de botella: 6,5 kg/día en parto 1, 7,0 kg/día en parto 2 y 7,9 kg/día de parto 3 en adelante (Kirwa et al., 2026). La hembra joven —la que más necesita— es la que menos come. Ese es el punto exacto donde se fabrica el llamado síndrome de segundo parto.
3. Días 0 a 2: se apaga la prolactina y se enciende el eje reproductivo
Durante toda la lactancia el amamantamiento sostiene concentraciones altas de prolactina, la hormona que gobierna la producción de leche. Su costo reproductivo es que, al mismo tiempo, mantiene frenado el eje que ordena la ovulación. La prolactina actúa directamente sobre las neuronas de kisspeptina del núcleo arcuato del hipotálamo, que son el marcapasos de los pulsos de GnRH; mientras la prolactina está alta, ese marcapasos permanece silenciado y no hay pulsos de LH suficientes para hacer crecer folículos (Moore, 2024).
Al retirar los lechones, el estímulo de succión desaparece, la prolactina cae en cuestión de horas y el freno se libera: las neuronas de kisspeptina reactivan su actividad, se restablece la pulsatilidad de GnRH y con ella la secreción pulsátil de LH y FSH. No es un interruptor sino una rampa: la velocidad con que se recupera la pulsatilidad depende del estado metabólico de la hembra, y allí es donde el catabolismo de la lactancia cobra la factura.
Las hembras de primer parto son las más lentas en este arranque. Su intervalo destete-celo es de 7,73 días en el parto 1 frente a 4,72 días en cerdas de parto 6 o más (Kirwa et al., 2026); otras revisiones reportan rangos de 7 a 15,9 días en primerizas contra 5 a 6 días en partos superiores (Corrales-Hernández et al., 2025).
Dos variables de manejo mueven fuertemente este resultado: la duración de la lactancia (lactancias de 25-26 días reducen los intervalos prolongados frente a lactancias más cortas).
4. Días 2 a 5: preparación ovárica
Liberado el freno, la FSH recluta una cohorte de folículos antrales que pasan de unos 2-3 mm a 6-8 mm en tres a cuatro días. Estos folículos maduran el ovocito que llevan adentro y producen estradiol en cantidades crecientes, responsable de la conducta de celo y, al superar cierto umbral, del pico preovulatorio de LH.
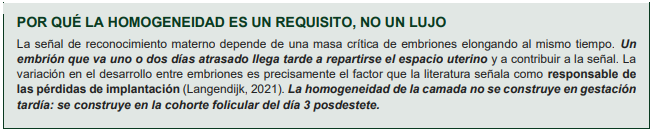
Aquí se define la tasa de ovulación y la homogeneidad de esa cohorte. Una cohorte pareja ovula ovocitos de calidad y madurez similares; una cohorte dispareja produce embriones que se desarrollarán a velocidades distintas, y esa diferencia se pagará más adelante, en la implantación (Bortolozzo et al., 2023).
Aumentar el alimento solo durante el intervalo destete-celo no rescata folículos que se formaron mal. El "flushing" ayuda en una hembra en buen estado; no repara a una hembra descapitalizada. La inversión debe hacerse antes: en la sala de partos (Bortolozzo et al., 2023).

5. Días 4 a 7: estro, ovulación y fecundación
El pico de LH desencadena la ovulación, un proceso escalonado que puede tomar varias horas hacia el último tercio del celo. Los ovocitos son captados por el oviducto y allí ocurre la fecundación.
El indicador de calidad de esta etapa es la poliespermia: cuando el ovocito no está bien madurado, falla el bloqueo a la entrada de más de un espermatozoide y el cigoto resultante es inviable. Ese 89 % de aumento en poliespermia documentado en cerdas "restringidas" de alimentación en lactancia (Costermans et al., 2020) representa embriones que se fecundaron pero nunca llegarán a la implantación, causando una pérdida invisible que aparece 115 días después como una camada más chica.
La consecuencia comercial de un intervalo destete-servicio prolongado también está cuantificada: la tasa de parto cae de 86,8 % a 78,9 % cuando la inseminación se realiza después del día 6 posdestete (Nam et al., 2025).
6. Días 5 a 12: el relevo hormonal — de estradiol a progesterona
Después de la ovulación, las paredes de los folículos vacíos se transforman en cuerpos lúteos mediante la luteinización. El estradiol cae y la progesterona comienza a subir, convirtiéndose en la hormona rectora del resto de la gestación.
La progesterona transforma el endometrio en una superficie secretora, activa las glándulas uterinas y las pone a producir histotrofo (la "leche uterina") que alimentará al embrión durante todo el periodo previo a la placenta funcional (Johnson et al., 2021). Sin progesterona suficiente y a tiempo, el embrión llega al útero y no encuentra alimento.

7. Días 7 a 14: elongación embrionaria y reconocimiento materno
Hacia el día 7 los embriones eclosionan de la zona pelúcida. Al día 10 son esferas de 0,5 a 1 mm. En el día 11 se dispara una elongación rapidísima: pasan de aproximadamente 1 mm a estructuras filamentosas de 100 a 200 mm en cuestión de horas, y hacia el día 15 alcanzan entre 800 y 1.000 mm de longitud (Johnson et al., 2025). Cada conceptus está literalmente "reclamando" su porción de superficie uterina.
Al elongarse, los conceptus secretan estrógenos, que constituyen la señal de reconocimiento materno de la gestación: redirigen la PGF2α hacia la luz uterina en lugar del torrente sanguíneo, impiden la luteólisis y garantizan que los cuerpos lúteos sigan produciendo progesterona (Johnson et al., 2025; Johnson et al., 2021).
8. Días 13 a 25: implantación — el cuello de botella real
La adhesión e implantación en la cerda no es un evento puntual, sino un proceso extendido que abarca del día 13 al día 25 de gestación (Johnson et al., 2025). El trofoblasto se adhiere al epitelio uterino sin invadirlo —la placenta porcina es epiteliocorial y difusa.
Dato clave: aproximadamente dos tercios de las pérdidas embrionarias ocurren entre los días 12 y 21, durante la implantación, y son independientes del espacio uterino —impulsadas por la variación en el desarrollo entre embriones—. El tercio restante ocurre entre los días 21 y 35 y sí es dependiente del espacio (Langendijk, 2021). Es decir: la mayor parte de lo que se pierde no se pierde por falta de útero, sino por falta de sincronía.
9. Días 25 a 40: placentación abundante y homogénea
Superada la implantación, cada conceptus consolida su placenta. A partir del día 21-25 la limitación de espacio uterino empieza a operar realmente: en modelos con espacio ampliado, la longitud del sitio de implantación aumentó 22 % y el peso embrionario 14 % (Langendijk, 2021). En la cerda, el peso del lechón depende mucho más de la capacidad de su placenta que de su propia genética.
La alimentación en gestación temprana tiene efectos medibles: en primerizas alojadas en grupo, elevar el consumo de 1,9 a 2,9 kg/día en gestación temprana redujo la proporción de lechones menores de 1.000 g del 17,9 % al 5,2-6,5 % (Dumniem et al., 2025). El efecto no es lineal ni universal: en cerdas de parto 1 y 2 en corrales colectivos, aumentar el consumo de 1,8 a 3,2 kg/día entre los días 6 y 30 redujo linealmente el total de nacidos (Bortolozzo et al., 2023). La lectura correcta es alimentar según condición corporal y momento: moderado en los primeros días, ajustado al estado corporal desde la segunda semana.
Vale aclarar qué no funciona: el "bump feeding" a partir del día 90 de gestación no mejoró el peso al nacimiento en animales hiperprolíficos, y sobrealimentar en gestación tardía reduce linealmente el rendimiento de calostro y deprime el consumo de la lactancia siguiente (Bortolozzo et al., 2023; Faccin et al., 2022). Corregir tarde no solo no arregla: empeora el ciclo siguiente.
10. Las hembras de parto 1 y 2 todavía están creciendo
Este es el punto donde más dinero se pierde en las granjas de genética hiperprolífica, y merece tratarse aparte.
Una cerda de primer parto no ha alcanzado su peso adulto (Bortolozzo et al., 2023). A diferencia de la multípara —que puede destinar prácticamente todo a la reproducción— la primeriza debe repartir nutrientes entre su propio crecimiento, la gestación y la lactancia (Corrales-Hernández et al., 2025). Si el manejo no reconoce ese reparto, el organismo lo resuelve solo: sacrifica reservas corporales y, con ellas, el ciclo siguiente.
La ganancia de peso materno esperada durante la primera gestación es de 35 a 40 kg (Bortolozzo et al., 2023), por encima del peso de la camada y los anexos. Y la hembra de parto 1 es, a la vez, la que menos come en lactancia y la que más tarda en volver a celo (Kirwa et al., 2026). Manejarla igual que a una cerda de parto 4 es garantizar el bache de segundo parto.
11. Metas de manejo para la ventana destete → día 40

12. Las cuatro decisiones que mueven la aguja
- Medir condición corporal al parto y al destete, no estimarla. Calibrador o ecógrafo, con umbrales escritos: <10% de pérdida de peso, ≤3 mm de grasa, 17-19 mm al parto (Mun et al., 2024; Kirwa et al., 2026).
- Separar el lote de parto 1 y 2 y manejarlo aparte. Come menos, tarda más y todavía está creciendo (Kirwa et al., 2026; Corrales-Hernández et al., 2025).
- Blindar los días 0 a 25 posinseminación. Sin mezclas entre los días 3 y 10, sin sobrealimentación los primeros 3 días, sin estrés térmico durante la implantación (Bortolozzo et al., 2023; Langendijk, 2021).
- Ajustar la carga de lactancia. Amamantar 15 o más lechones suma 1,3 días de intervalo y puede restar el 12% de éxito en el parto siguiente: nodrizas y equilibrado de camadas son herramientas reproductivas, no solo de supervivencia (Kirwa et al., 2026; Bortolozzo et al., 2023).
Conclusión
La cerda hiperprolífica se compra con la genética. La cerda hiperproductiva —la que sostiene camadas grandes, homogéneas y viables durante una vida larga— se construye en estos 40 días, repetidos ciclo tras ciclo. Y la mayor parte de esa construcción no ocurre en la sala de servicio:
- Ocurre en el comedero de la sala de partos, razón de mucho peso para tener en nuestra granja CERDAS que por su componente GENÉTICO SEAN CAPACES de consumir muy bien en la lactancia, sobre todo en aquellas granjas por encima de 24 grados C y que NO están climatizadas, (características propias de la hembra TN70 de TOPIGS NORSVIN).
- En la báscula del destete. Y En la decisión de no mover a una hembra que está implantando.
Bibliografía
• Bortolozzo, F. P., Zanin, G. P., Ulguim, R. R., & Mellagi, A. P. G. (2023). Managing Reproduction in Hyperprolific Sow Herds. Animals, 13(11), 1842.
• Carrión-López, M. J. et al. (2022). Effect of Sow Body Weight at First Service on Body Status and Performance during First Parity and Lifetime. Animals, 12(23), 3399.
• Corrales-Hernández, A. A. et al. (2025). A review: influence of the sow's parity on farrowing and neonate performance. Frontiers in Animal Science, 6, 1568955.
• Costermans, N. G. J. et al. (2020). Consequences of negative energy balance on follicular development and oocyte quality in primiparous sows. Biology of Reproduction, 102(2), 388-398.
• Dumniem, N., Parsons, T. D., & Tummaruk, P. (2025). Feeding levels during early gestation in a group-housing system for primiparous sows. Animal Bioscience, 38(2), 360-370.
• Faccin, J. E. G. et al. (2022). Gilt development to improve offspring performance and survivability. Journal of Animal Science, 100(6), skac128.
• Johnson, G. A., Bazer, F. W., & Seo, H. (2021). The Early Stages of Implantation and Placentation in the Pig. Advances in Anatomy, Embryology and Cell Biology, 234, 61-89.
• Johnson, G. A. et al. (2025). Conceptus Elongation, Implantation, and Early Placental Development in Species with Central Implantation. Biomolecules, 15(7), 1037.
• Kirwa, E. et al. (2026). Assessment of the relationship between lactation feeding patterns, litter performance, and sow characteristics on sow efficiency metrics. Translational Animal Science, 10, txaf174.
• Langendijk, P. (2021). Latest Advances in Sow Nutrition during Early Gestation. Animals, 11(6), 1720.
• Moore, A. M. (2024). Lactation: How to pause fertility. eLife, 13, e97432.
• Mun, H.-S. et al. (2024). Backfat Thickness at Pre-Farrowing: Indicators of Sow Reproductive Performance. Agriculture, 14(1), 24.
• Nam, N. H. et al. (2025). Determinants of prolonged weaning-to-service interval in primiparous Landrace × Yorkshire sows under tropical conditions. Veterinary World, 18(7), 2031-2038.
Productos


Contacto:
Contacta con nosotros a través del siguiente formulario.